以往在植物里找边界蛋白,走的是别的路子;这篇换了入口,从cohesin调控子PDS5A切入。用Hi-C和Micro-C证明:它限制SYN4依赖的长距离接触,WAPL1/2起反向作用,启动子锚点与cis调控也连了起来。2026年发在The Plant Cell,英文题目是PDS5A restricts SYN4-dependent long-range chromatin contacts to shape TAD-like chromatin architecture in Arabidopsis,中文可译作PDS5A限制SYN4依赖的长距离染色质接触,塑造拟南芥TAD样染色质结构。团队来自德国霍恩海姆大学表观遗传学系和法国巴黎-萨克雷植物科学研究所等。
这项工作的目标,是弄清植物TAD-like结构到底由谁塑造。切入点选在PDS5A,方法上把Hi-C/Micro-C、遗传上位和生化互作连起来,依次看结构表型、遗传依赖、蛋白机制和锚点功能。
Fig.1A-E先给出表型:pds5a叶片里有1185个TAD-like domains,野生型中几乎看不到。跨组织、倍性和热胁迫比较下来,多数domain是稳定的,和DEG的关联也不多;热胁迫下KEE会解离,但局部domain没变,2C/4C/8C之间也相似。这样就把转录、倍性和KEE作为主因排除了,问题转向cohesin调控。
Fig.2A接着用突变体做遗传上位。pds5a wapl1 wapl2里,长程接触越过边界的情况增强;pds5a syn4中TAD-like完全消失,syn2则不影响。结果把关系定下来:SYN4必需,WAPL1/2起拮抗,PDS5A是主要卸载因子。
Fig.2B换到生化互作:用PDS5A:2HA IP-MS回收到了SMC1、SMC3和SYN4,说明PDS5A在体内和cohesin结合有支持。下一步要拆直接互作,也要看Tudor-H3K4me1是否必需,这里先搭桥。
再往后,Micro-C把高转录启动子定为loop/stripe锚点;远端锚点突变则用来检验pds5a的新接触能不能作为cis模块影响靶基因。
研究的主线,是把遗传扰动和高分辨染色质构象捕获放在一起用。先在pds5a背景下做Hi-C,比较不同组织、热胁迫和倍性条件,看TAD样结构稳不稳,同时把转录重编程和内复制这两个主要混杂因素排掉;接着用wapl1/2、syn4上位组合,区分PDS5A跟黏连蛋白卸载以及kleisin之间的关系。之后用Micro-C定位可及、高表达的启动子,把它们当作loop和stripe的锚点,再通过远端锚点突变,检验pds5a里新形成的接触有没有顺式调控功能。
Figure 1:拿WT和pds5a的Hi-C图直接对照,pds5a叶片冒出1185个TAD-like结构,WT里基本看不出;这些结构跨叶、根、萌发种子大体稳定,热胁迫下KEE会散但局部结构没跟着变,2C/4C/8C也相似,说明这类结构不是组织表达或内复制的副产物。
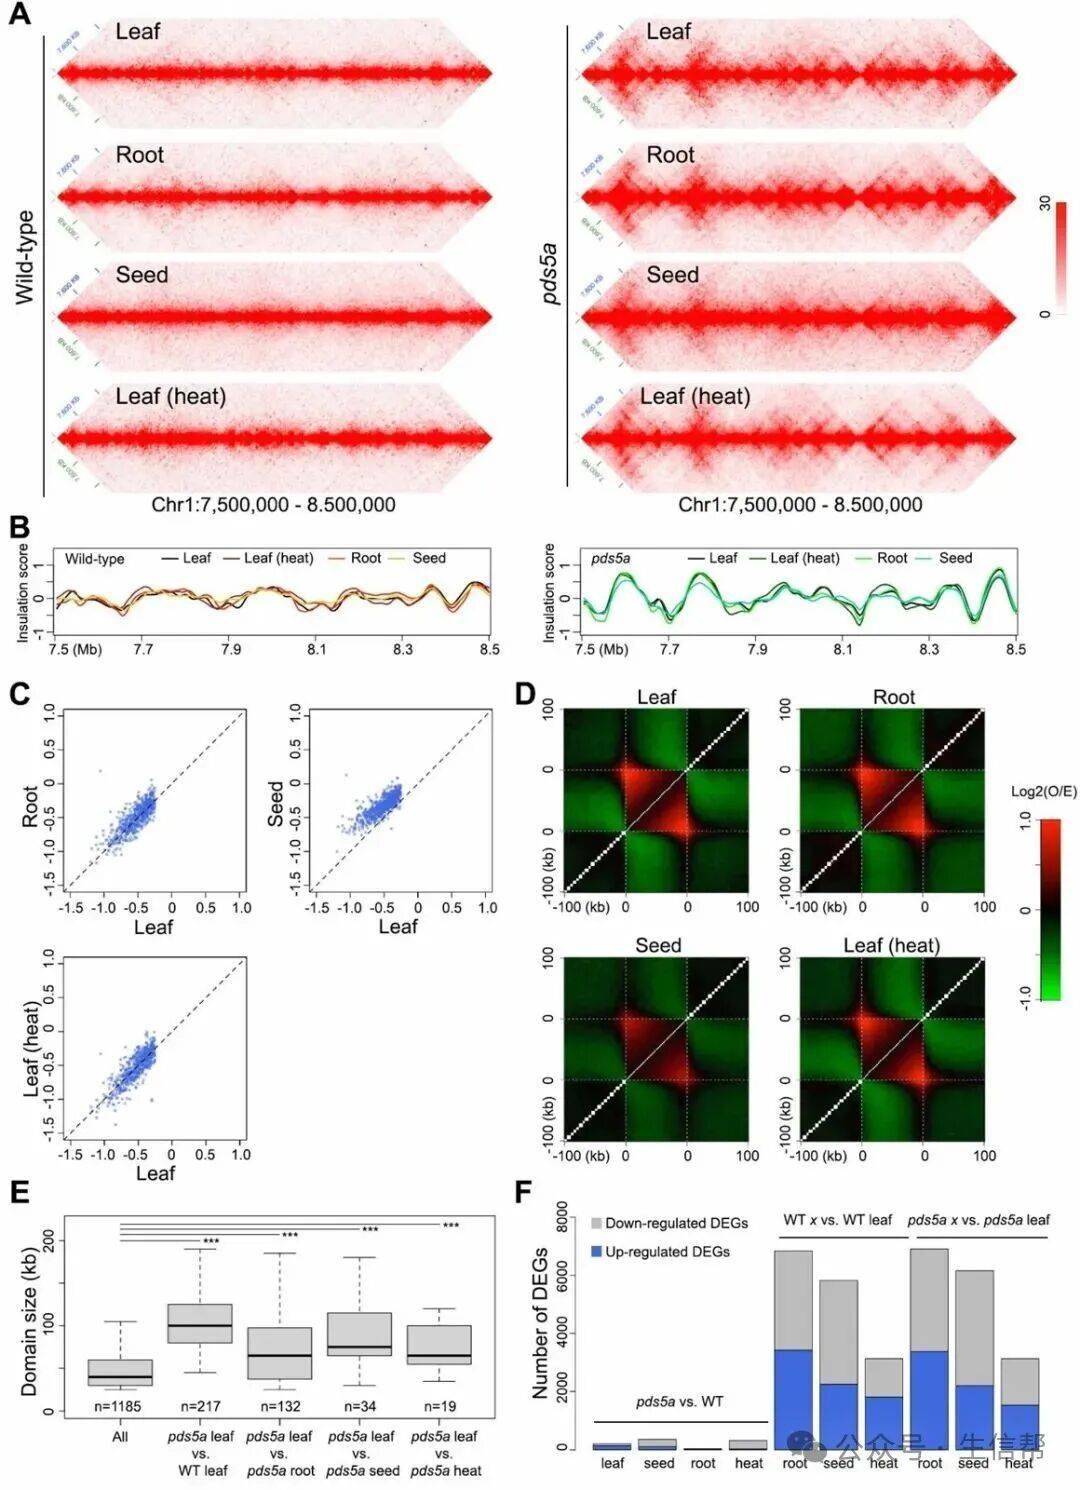
Figure 1
先把组织差异、胁迫和内复制这些干扰项排掉,后面做遗传拆解时起点就干净了。
做法上,拿5 kb分辨率的Hi-C去比叶片、根、萌发种子和热胁迫叶,绝缘分数、聚合TAD曲线都算,差异结构域和RNA-seq也一起做。
所以先别急着把账算到基因表达头上;这套结构本身挺稳,pds5a更像是把它显了出来。
Figure 2:把pds5a跟wapl1 wapl2、syn4、syn2做成高阶突变再上Hi-C,pds5a wapl1 wapl2把长距离接触推得更远,pds5a syn4则把TAD-like结构清空,syn2没这本事;IP-MS还从PDS5A:2HA里拉下SMC1、SMC3和SYN4,说明起作用的轴是PDS5A—WAPL—含SYN4的cohesin。
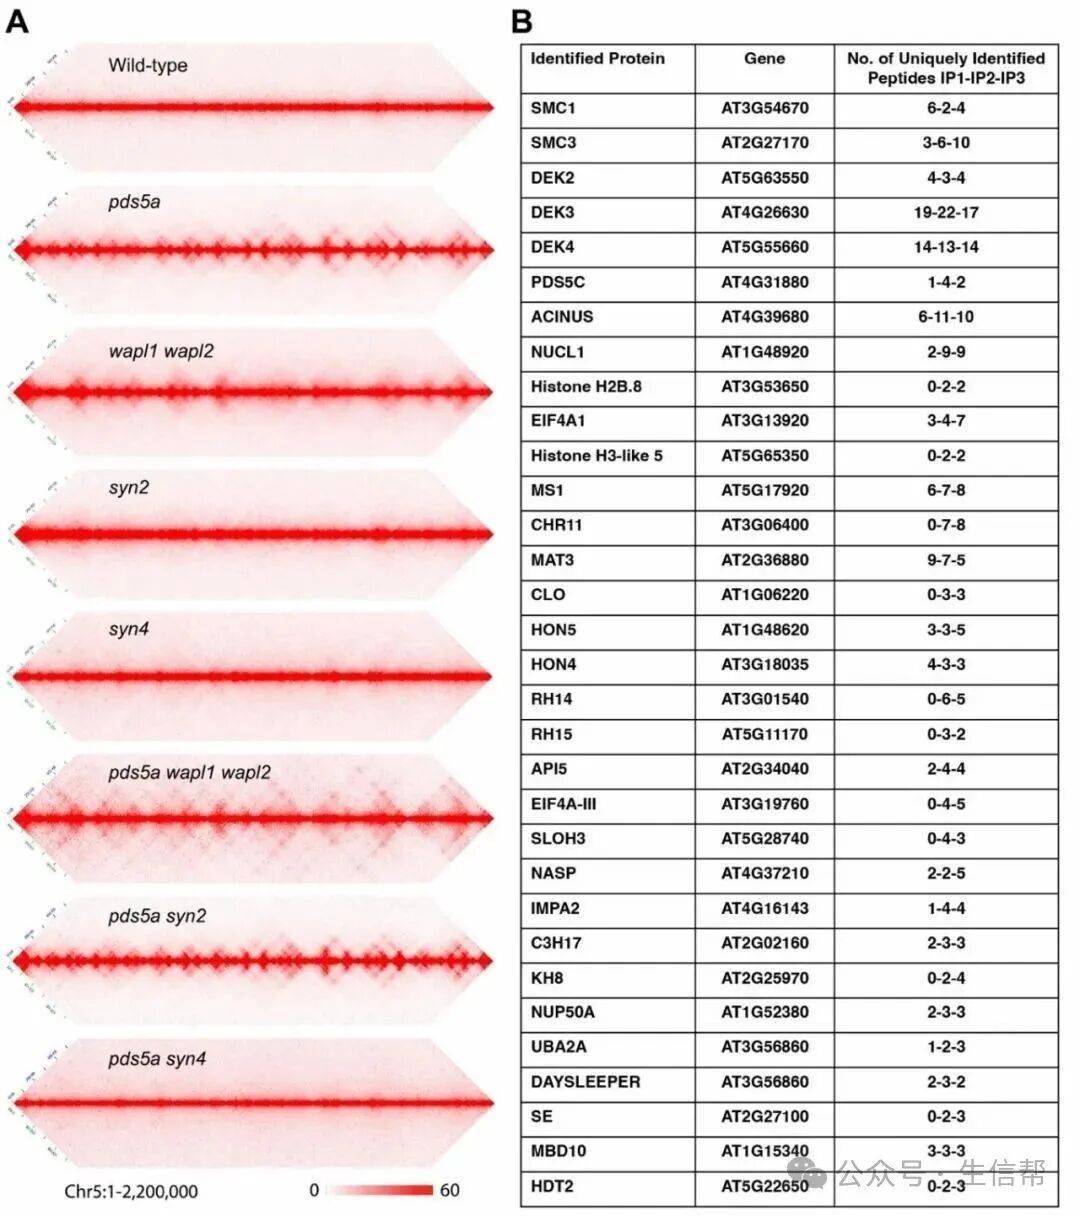
Figure 2
遗传上位关系在这里把“谁踩刹车、谁当发动机”分开了;顺着这个结果,下一步就要问PDS5A怎么去碰cohesin。
Hi-C这边用5 kb归一化矩阵看2.2 Mb的代表区域;IP-MS取14天龄地上部,用anti-HA磁珠富集,WT作阴性对照,质谱里只认至少两重复出现、WT又没有的蛋白。
旧模型里WAPL很抢戏;放到这套结果里,PDS5A更像主刹车,SYN4则更像主要发动机。
Figure 3:用酵母双杂交把PDS5A切成N端和C端,分别跟cohesin成员对接,明确阳性落在PDS5A_N对SCC3和SMC3的C端;这比只靠IP-MS“一锅端”更进一层,指向PDS5A通过SMC3附近界面贴住cohesin。
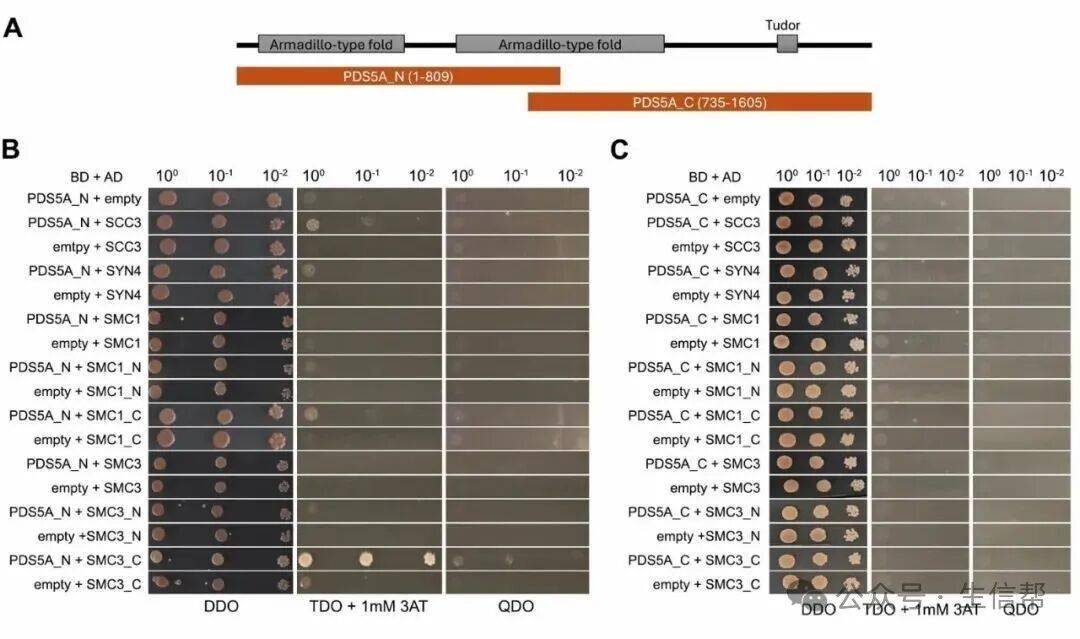
Figure 3
这一步的意义在于,从体内共纯化往前推到候选的pairwise接触,给PDS5A–cohesin模型补了一个能检验的接口。
实验是把PDS5A_N/C和SCC3、SYN4、SMC1/SMC3及其截短体分别克隆进BD/AD载体,Y2HGold共转化,再在DDO、TDO+3AT、QDO上做梯度点滴。
用一句话收:cohesin亚基并非都买账;眼下SMC3的C端和SCC3最像直接接头的位置。
Figure 4:先看PDS5A结合染色质,83%位点落在H3K4me1标记区;把Tudor域做三点突变后,PDS5A:2HA3A几乎丢掉染色质结合,可Hi-C里pds5a/b的TAD-like结构又被完全拉回WT样。这和“靠Tudor读H3K4me1来调控折叠”的旧设想相反,说明PDS5A管折叠不靠直接贴染色质。
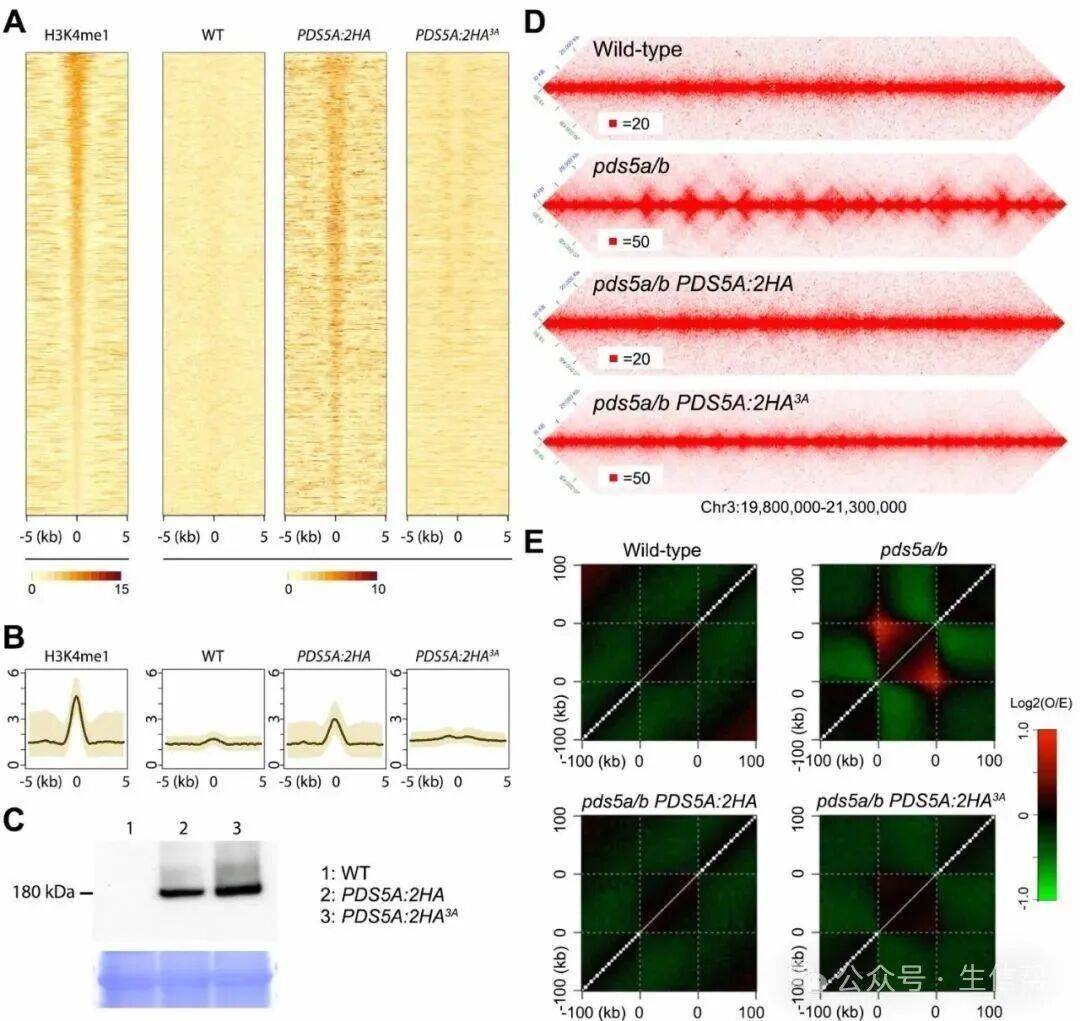
Figure 4
这里其实把“结合染色质”和“调控折叠”拆成了两件事。后面就能专心盯cohesin卸载,不用老盯着启动子占位。
数据这边,anti-HA ChIP-seq比较了WT、PDS5A:2HA和PDS5A:2HA3A;H3K4me1用的是已发表ChIP-seq的重分析。Hi-C则看5 kb归一化矩阵下的1.5 Mb区域和聚合曲线。
我的看法是,染色质结合更像备用功能;真正决定TAD的,还是PDS5A对cohesin的那只手。
Figure 5:把Micro-C拉到1 kb看细节,pds5a图里冒出一堆WT里几乎看不见的条纹和点状接触。548条stripes从锚点往邻域伸30–40 kb,SIP又抓到1677个loop;这些锚点偏向开放染色质、外向TSS和TAD边界附近,还富集植物site-II基序TGGGC(C/T)。这暗示植物用启动子/转录因子而不是CTCF来定锚。
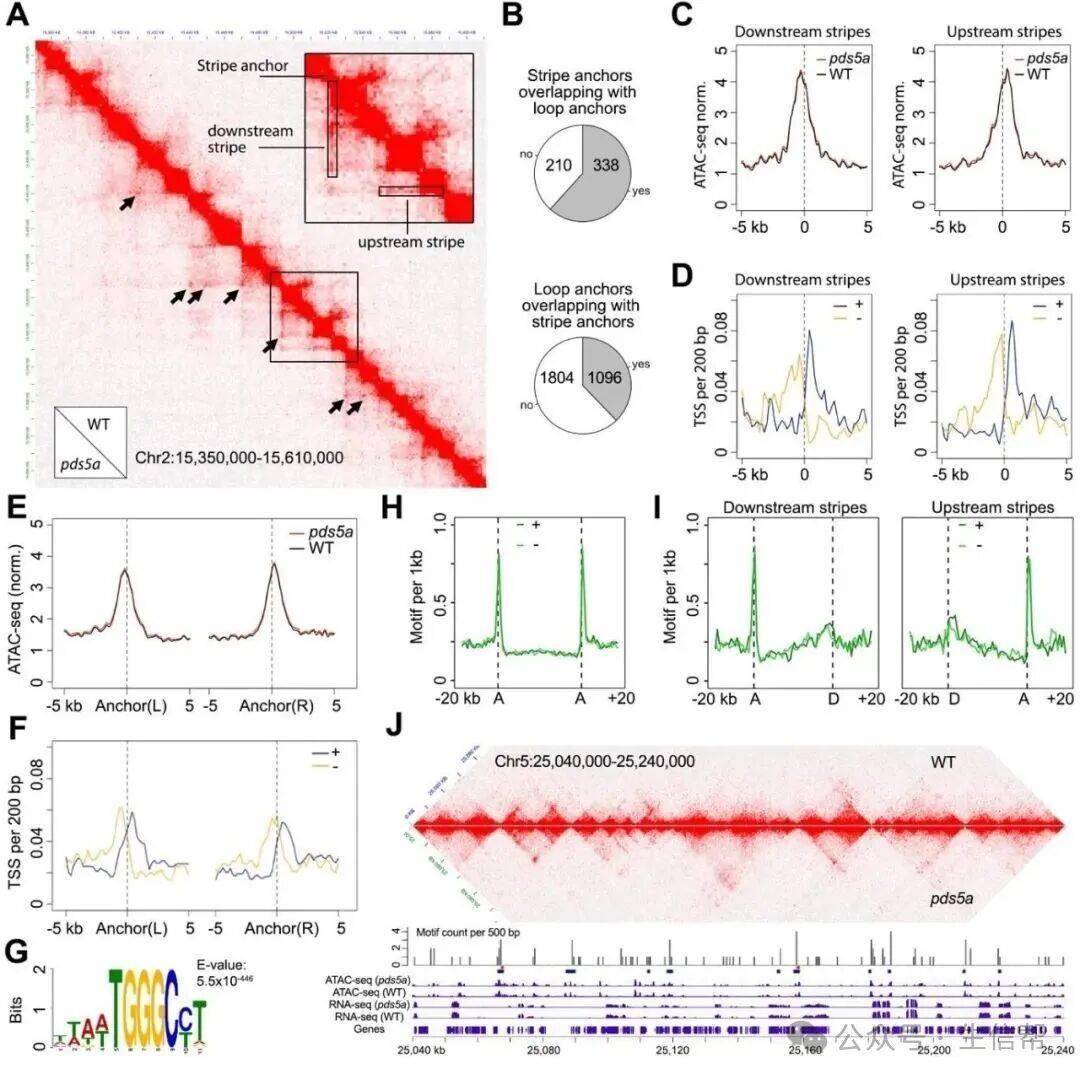
Figure 5
故事线也顺势从“有结构”推进到“锚点长什么样”,下一步才好拿远端启动子做功能测试。
小结一下,最有意思的是锚点像启动子,不像经典绝缘子——植物3D基因组的味道一下就出来了。
Figure 6:挑三个在pds5a里上调、启动子又跟远端位点新拉上关系的基因,把T-DNA插到候选增强子旁再跟pds5a杂交;其中两个基因的pds5a上调被压回去。Capture Micro-C显示插入点附近接触变少,但原来的loop和启动子—远端接触并没被拆,说明新接触能当cis调控模块用,作用距离比常见植物增强子—启动子远得多。
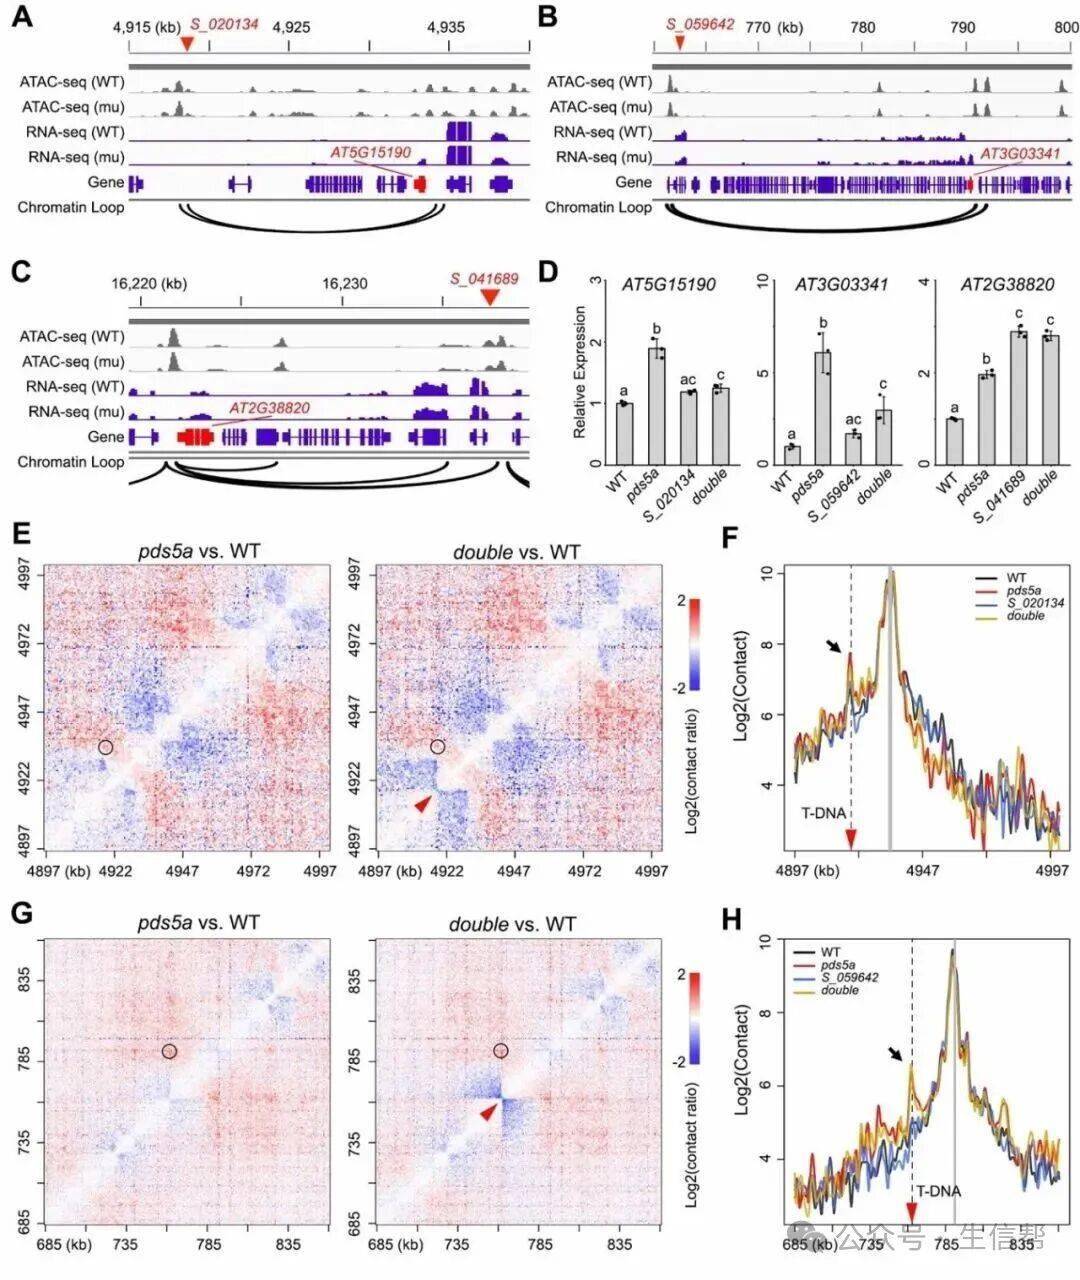
Figure 6
这张图想说的是:结构没断,表达却变了,提示loop把远端调控元件拉进了作用半径。
实验细节这块,候选位点用T-DNA插入系和pds5a杂交,qRT-PCR看表达;Capture Micro-C用BAC探针富集目标区,读段富集超过200倍,接触图按500 bp分辨率画。
不过只有两个位点,因果还不能说死;可“拉远—调控”这条线,已经比纯相关性强了一截。
Figure 7:把前面串成模型——PDS5A在时把cohesin从染色质上卸下来,loop extrusion被及时掐断,长距离接触受控;PDS5A没了,cohesin赖在DNA上继续挤,pds5a里就显出TAD-like结构和长loop,锚点还富集site-II;WAPL也踩刹车,但主刹车仍是PDS5A。
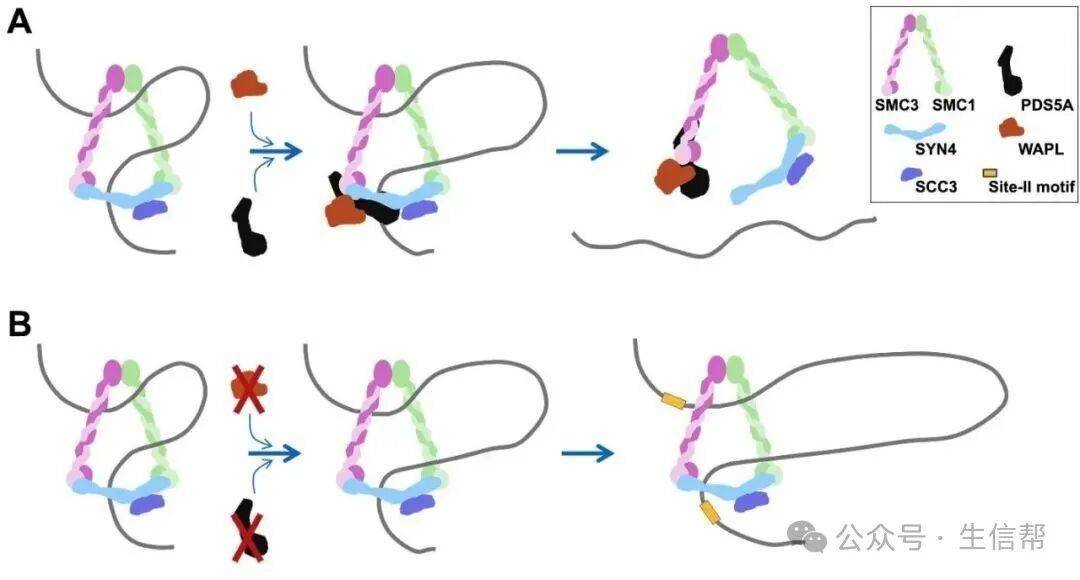
Figure 7
这个模型的好处是能拿去检验:遗传、生化、Micro-C和基序几条线索,最后都收进同一张图里。
它整合的内容包括Hi-C/Micro-C遗传比较、PDS5A IP-MS与Y2H、Tudor突变ChIP-seq/Hi-C,还有stripe/loop锚点的ATAC-seq和motif分析。
最抓人的是,这版模型把植物TAD-like结构归到“卸载不足”,没有归到“绝缘子缺失”,方向很不一样。
过去常把植物TAD样结构更多归因于表观标记和边界蛋白,这篇则把cohesin调控模块推到了中心:PDS5A像刹车,SYN4是长程接触的关键,WAPL1/2偏要跟它对着干;
Figure 4